Jerven på Vancouver Island
Lov på eksamen
- Kalkulator
- CAS
- Graftegner og regneark
- Lærebok, formelsamling og egne notater
Ikke åpent internett, kommunikasjon med andre eller kunstig intelligens.
Kan den løses uten PC?
Alle deloppgavene kan løses uten PC.
Fra 2027 er det bare kalkulator og skriftlige hjelpemidler på del 2. Vurderingen er gjort med KI og kan inneholde feil.
Lest inn av KI og ikke kontrollert manuelt enda — kan inneholde feil.
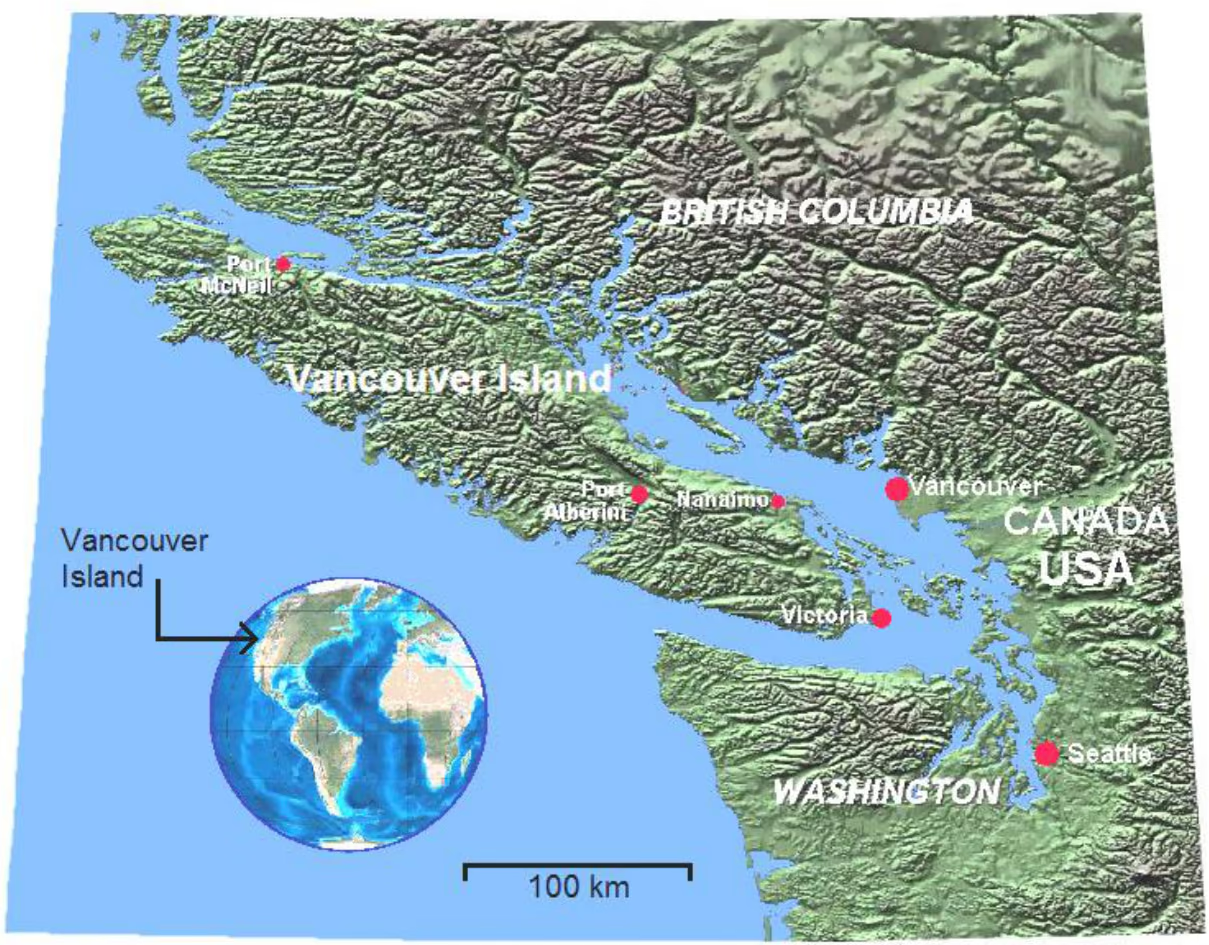
På øya Vancouver Island utenfor vestkysten av Canada levde det helt til nylig en egen populasjon av jerv som var så ulik fastlandsjerven at noen forskere regnet den som en egen underart: Gulo gulo vancouverensis. Jerver kan av og til krysse sundet mellom øya og fastlandet, men det skjer ikke ofte.
Gi en kort genetisk forklaring på hvilke faktorer som kan ha medvirket til å gjøre populasjonen så forskjellig fra fastlandsjerven.
Jerver er skye dyr og trenger svære områder å ferdes i. Jerven lever hovedsakelig av åtsel, men jakter også på større pattedyr.
Viltforskere i Canada regner nå med at den spesielle jervestammen er borte fordi leveområdet er blitt delt opp og skadet av veier, tømmerhogst og aktiviteter knyttet til friluftsliv.
Forklar hvordan mennesker ved å påvirke leveområdet kan skade jervebestanden, selv om hverken tømmerhoggere eller friluftsmennesker noen gang har vært i nær kontakt med jervene, og svært sjelden har sett dem.
Selv om det kanskje finnes noen få jerver igjen på øya, regner forskerne med at de typiske særtrekkene til Vancouver Island-jerven nå er borte.
Forklar hvordan forskerne, selv uten å undersøke DNA fra for eksempel avføringsprøver, kan hevde at de genetiske egenskapene til jervestammen ikke lenger kan være de samme hvis det bare lever to eller tre jerveindivider igjen på øya.
I fjella i Sør-Norge regner en med at den siste faste jervebestanden ble utryddet i 1965, og at det bare var igjen noen få streifdyr. Siden har bestanden tatt seg opp igjen.
Anta at den sørnorske bestanden stammer fra mindre enn ti dyr som streifet i området, og at bestanden siden har vokst til mer enn 50 dyr som i praksis har vært genetisk isolert fra både den svenske bestanden og bestanden i Nord-Norge.
Forklar hva det kan ha å si for overlevelsesevnen og den genetiske variasjonen i den sørnorske bestanden hvis den har oppstått fra så få dyr. Bruk kunnskaper fra genetikk og evolusjon.
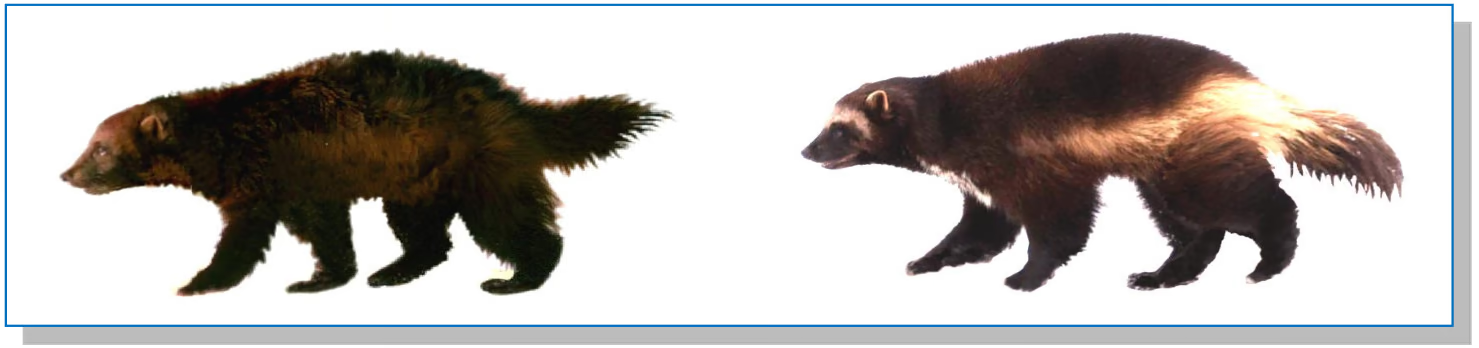
Varianter av pels og pelsfarge hos jerv
Den mørkebrune pelsen til jerven har lysere markeringer i pannen, brystet, langs siden og over halerota.
Gå ut fra at det er et allelpar (to genvarianter) A og a som bestemmer hvor lyse markeringene er, slik at homozygote jerver med genotype AA er helt mørke, at jerver med genotypen Aa har gule markeringer, og at jerver med genotype aa har hvite markeringer.
Normal pels har lange, stive dekkhår som gjør pelsen glatt og vannavstøtende. Under ligger en tett matte av bunnhår som gir varmeisolasjon.
En sjelden gang kan det finnes individer der de stive dekkhårene mangler helt eller delvis. Gå ut fra at dette skyldes et annet allelpar Bb, der det fullstendig dominante allelet B gir normale dekkhår, og at jerver som er homozygote for allelet b, får pels som er mer eller mindre uten dekkhår.
To jerver med gule markeringer og normal pels får en unge med helt mørk pels som mangler dekkhår. Skriv genotypene til de tre jervene, og forklar hvordan du kan vite at genotypene må være slik.
Gå ut fra at genene for pelsfarge og dekkhår ikke er koblet. Sett opp et dihybrid krysningsskjema for de to jervene som fikk ungen uten dekkhår, og lag en tabell over hvilke fenotyper som er mulig for ungene deres, og hvor sannsynlig hver fenotype vil være.
Ta utgangspunkt i den samme krysningen mellom de to jervene, og forklar hvilke alleler (genvarianter) som må ligge på samme kromosom hvis de to genene likevel er koblet.
Fasit
Sundet virker som en barriere, så genflyten mellom øya og fastlandet er nesten null. I den lille øybestanden endrer genetisk drift allelfrekvensene tilfeldig, naturlig utvalg virker under andre miljøforhold, og nye mutasjoner spres bare på øya.
Veier, hogst og friluftsliv deler leveområdet opp og skremmer de sky dyra bort. Det effektive leveområdet og åtseltilgangen blir mindre, delbestandene blir små og isolerte, og hi kan bli forlatt.
To eller tre dyr kan til sammen bære høyst fire eller seks alleler per genlokus. Det meste av variasjonen i stammen er dermed borte, og hvilke alleler som er igjen, er helt tilfeldig.
Grunnleggereffekt og flaskehals gir lav genetisk variasjon. Innavl øker andelen homozygote individer og gir innavlsdepresjon. Bestanden tåler nye sykdommer og miljøendringer dårligere.
Begge foreldrene har genotypen AaBb, og ungen har genotypen AAbb.
mørk med normal pels, gule markeringer og normal pels, hvite markeringer og normal pels, mørk uten dekkhår, gule markeringer uten dekkhår og hvite markeringer uten dekkhår.
A og b må ligge på det ene kromosomet, og a og B på det homologe kromosomet.
LøsningsforslagKI-generert
Populasjonen på øya er geografisk isolert fra fastlandsbestanden. Jerver krysser sundet bare en sjelden gang, så genflyten mellom bestandene er nesten null. Da virker fire genetiske forhold hver for seg på øya.
Øybestanden er liten. I små populasjoner får genetisk drift stor betydning: allelfrekvensene endres tilfeldig fra generasjon til generasjon, og alleler kan forsvinne helt eller bli fiksert. Bestanden kan også ha startet med få individer, slik at den fra begynnelsen bare hadde et tilfeldig utvalg av fastlandsjervens alleler (grunnleggereffekt).
Miljøet på øya er ikke det samme som på fastlandet. Klima, byttedyr, konkurrenter og tilgang på åtsel er annerledes, så det naturlige utvalget favoriserer andre alleler enn på fastlandet.
Nye mutasjoner som oppstår på øya, blir værende der, fordi individene ikke blander seg med fastlandsbestanden.
Over mange generasjoner har dette gjort øypopulasjonen så genetisk forskjellig at den regnes som en egen underart. Dette er starten på allopatrisk artsdannelse.
Jerven er sky og trenger store, uforstyrrede områder. Når veier, hogstfelt og hytter og løyper deler leveområdet opp i mindre biter, blir det ikke bare mindre areal igjen — jerven unngår også en sone rundt all menneskelig aktivitet. Det effektive leveområdet blir derfor mye mindre enn kartet viser.
Veier og bebyggelse virker som barrierer. Bestanden splittes i små, isolerte delbestander. Da blir det mindre genflyt mellom dem, og innavl og genetisk drift får større betydning i hver delbestand. Små delbestander kan dø ut av rene tilfeldigheter, for eksempel et dårlig år eller en sykdom.
Hogst endrer også næringsgrunnlaget. Jerven lever mest av åtsel etter større pattedyr, og færre byttedyr og færre store rovdyr i området gir mindre åtsel.
Forstyrrelse er særlig kritisk i yngletida. Jerven har hi i snøfonner om vinteren og våren. Blir tispa forstyrret av skiløpere eller snøscootere, kan hun flytte eller forlate hiet, og ungene dør. Slik kan mennesker gjøre stor skade uten noen gang å se dyra.
Antallet alleler i en populasjon er begrenset av antallet individer. Hvert individ er diploid og har høyst to ulike alleler per genlokus. To eller tre jerver kan derfor til sammen bære høyst fire eller seks alleler per gen, mens en stor bestand kunne ha mange flere. Alt annet er borte.
Hvilke alleler som tilfeldigvis finnes hos akkurat disse dyra, er dessuten tilfeldig. De to eller tre siste jervene er ikke noe representativt utvalg av stammen. Denne tilfeldige endringen av allelfrekvensene er genetisk drift, og drift virker sterkest når bestanden er liten. En slik ekstrem flaskehals endrer allelfrekvensene fullstendig på få generasjoner.
Forskerne trenger derfor ikke DNA-prøver for å si dette. Det følger av genetikken alene at den kombinasjonen av alleler som kjennetegnet Vancouver Island-jerven, ikke kan være bevart hos to eller tre individer.
Når en bestand bygges opp igjen fra færre enn ti dyr, virker grunnleggereffekten. Bestanden kan bare inneholde de allelene disse få dyra hadde med seg. Den genetiske variasjonen er derfor lav, selv om antallet individer senere har vokst til over 50.
Alle dyra i bestanden er i slekt, så paringene blir innavl. Innavl øker andelen homozygote individer. Skadelige recessive alleler som var skjult i heterozygot tilstand, kommer da fram i fenotypen. Resultatet kan bli innavlsdepresjon: færre unger per kull, høyere ungedødelighet, misdannelser, dårligere sædkvalitet og svakere immunforsvar.
Lav genetisk variasjon svekker også evnen til å tilpasse seg. Naturlig utvalg kan bare virke på variasjon som allerede finnes. Kommer det en ny sykdom, et nytt klima eller ny konkurranse, er sjansen liten for at noen individer har alleler som gjør dem motstandsdyktige. Hele bestanden kan da bli slått ut.
Siden bestanden er genetisk isolert, tilføres det ingen nye alleler utenfra, og genetisk drift fortsetter å fjerne variasjon. Et forvaltningstiltak er derfor å sikre kontakt med den svenske bestanden og bestanden i Nord-Norge, slik at det kommer genflyt inn.
Pelsfargen arves med ufullstendig dominans: AA er helt mørk, Aa har gule markeringer og aa har hvite markeringer. Dekkhår arves med fullstendig dominans: B gir normale dekkhår, og bare bb mangler dekkhår.
Begge foreldrene har gule markeringer. Da må de ha genotypen Aa, for bare heterozygote jerver får gule markeringer. Foreldrene har normal pels, så de har minst ett B-allel.
Ungen mangler dekkhår og må derfor være bb. Den har fått ett b-allel fra hver av foreldrene. Siden foreldrene selv har normal pels, kan de ikke være bb — de må være Bb.
Ungen er helt mørk og har genotypen AA. Det stemmer med Aa × Aa, som kan gi AA.
Foreldrene er altså AaBb og AaBb, og ungen er AAbb.
Begge foreldrene er AaBb. Når genene ikke er koblet, ligger de på hvert sitt kromosompar og fordeles uavhengig i meiosen. Hver forelder lager fire like sannsynlige kjønnsceller: AB, Ab, aB og ab.
| AB | Ab | aB | ab | |
|---|---|---|---|---|
| AB | AABB | AABb | AaBB | AaBb |
| Ab | AABb | AAbb | AaBb | Aabb |
| aB | AaBB | AaBb | aaBB | aaBb |
| ab | AaBb | Aabb | aaBb | aabb |
Pelsfarge gir forholdet 1 AA : 2 Aa : 1 aa, og dekkhår gir 3 med minst ett B mot 1 bb. Til sammen blir fordelingen slik:
| Fenotype | Genotyper | Av 16 | Sannsynlighet |
|---|---|---|---|
| Helt mørk, normal pels | AABB, AABb | 3 | 18,75 % |
| Gule markeringer, normal pels | AaBB, AaBb | 6 | 37,5 % |
| Hvite markeringer, normal pels | aaBB, aaBb | 3 | 18,75 % |
| Helt mørk, uten dekkhår | AAbb | 1 | 6,25 % |
| Gule markeringer, uten dekkhår | Aabb | 2 | 12,5 % |
| Hvite markeringer, uten dekkhår | aabb | 1 | 6,25 % |
Forholdstallet er 3 : 6 : 3 : 1 : 2 : 1, og summen er 16 av 16.
Er genene koblet, ligger de på det samme kromosomparet og følger hverandre i meiosen. En forelder lager da i hovedsak bare de to allelkombinasjonene den selv har på hvert av de to homologe kromosomene.
Ungen har genotypen AAbb. Den har altså fått kjønnscellen Ab fra begge foreldrene. For at Ab skal være en vanlig kjønnscelle hos en forelder med genotypen AaBb, må A og b ligge på det samme kromosomet. Det andre, homologe kromosomet må da bære a og B.
Begge foreldrene må derfor ha koblingen Ab / aB. De to vanlige kjønnscellene deres er Ab og aB, mens AB og ab bare kan oppstå ved overkrysning.
Hadde foreldrene i stedet hatt koblingen AB / ab, måtte Ab-kjønnscellen ha kommet fra en overkrysning hos begge foreldrene samtidig. Det er mulig, men lite sannsynlig. Koblingen Ab / aB er derfor den rimelige forklaringen.